Raumenų pažeida (angl. muscle damage) – sportinis terminas, reiškia raumenų skaidulose atsiradusias mikrotraumas, dėl intensyvios ar neįprastai aukštesnės fizinės veiklos. Tokios mikrotraumos yra natūrali organizmo reakcija į patiriamą fizinį krūvį. Kas kart, po tokios pažeidos organizmas yra priverstas atsistatyti iki pradinio lygio, o jei viskas daroma tinkamai (treniruotės, miegas, mityba ir pan.), tai organizmas gali atsistatyti kiek daugiau nei buvo prieš esamą pažeidą. Tokiu būdu vyksta organizmo adaptacija ir stimuliuojamas raumenų augimas. Gali pasireikšti vėluojantis raumenų skausmas (DOMS) — atsirandantis po 12–72 valandų.
Raumenų pažeidą žinoma galima nagrinėti ir ne tik kaip sportinį terminą. Šiuo atveju, dažniausiai medicinoje naudojamo termino reikšmė būtų raumens audinio sužalojimas, kuris pasireiškia skausmu, patinimu, jautrumu, silpnumu, mėlynėmis (sumušimais) ar net plyšimu, dažniausiai dėl traumų (pvz., sporte, buityje, darbe), pertempimo, per didelio krūvio ar nejudrumo. Pažeidimo laipsnis svyruoja nuo lengvo patempimo (kuris gyja savaime) iki sunkaus raumens plyšimo, reikalaujančios medicininės apžiūros, imobilizacijos ir reabilitacijos, kartais net chirurginio įsikišimo.
Bet šiame straipsnyje nagrinėsime tik sportinę šio termino reikšmę, kai sportininkas tyčia siekia sukelti raumenyse mikrotraumas, taip siekiant skatinti raumeninio audinio augimo. Analizės pradžioje, trumpai panagrinėkime teorijas, kaip aplamai arba kokiu mechanizmu susitraukinėja mūsų raumenys ir kokiu būdu atsiranda raumenų skausmas po intensyvios sporto treniruotės?
Skeleto raumenų susitraukimo ir atsipalaidavimo mechanizmas (santrauka).
Raumuo susitraukia dalyvaujant miofibrilėms. Raumens susitraukimo mechanizmas aiškinamas slenkančių siūlų teorija. Nustatyta, kad miozino galuose yra judrios galvutės. Susitraukiant raumeniui, miozino galvutės turi įsiterpti į aktino siūlų duobutes (aktyviuosius centrus). Ramybės metu (atsipalaidavus raumeniui) šiuos centrus uždengia baltyminė struktūra tropomiozinas. Prie tropomiozino jungiasi Ca2+ jonų receptorius troponinas. Ca2+ jonai būtini raumeniui susitraukti. Jie yra raumeninės ląstelės sarkoplazminio tinklo cisternose.
Kad raumuo susitrauktų, nugaros smegenų ir galvos smegenų kamieno motoriniai neuronai per išcentrinius periferinius nervus siunčia dirginimus į nervų – raumenų sinapsę. Iš sinapsės išsiskyręs mediatorius acetilcholinas jungiasi su postsinapsinėje membranoje esančiais N cholinoreceptoriais. Dėl to atsidaro Na+ jonų kanalai ir raumeninė ląstelė depoliarizuojasi. Depoliarizacijos metu iš cisternų į citoplazmą išsiskiria laisvi Ca2+ jonai.
Citoplazmoje Ca2+ jonai jungiasi su receptoriumi troponinu, ir aktino aktyviuosius centrus dengiantis tropomiozinas nuslenka. Tuo metu į atsivėrusias aktino duobutes įsiterpia miozino galvutės ir tarp miozino bei aktino susidaro skersiniai tilteliai. Miozino galvutės, ritmiškai įsiterpdamos bei besisukdamos, vis daugiau įtraukia aktino siūlų į vidų. Raumuo pradeda susitraukti: I diskas trumpėja, Z membranos priartėja (sarkomeras trumpėja). A diskas susitraukimo metu nekinta. Kuo daugiau miozino galvučių įsiterpia į aktino siūlus, tuo susitraukimo jėga didėja.
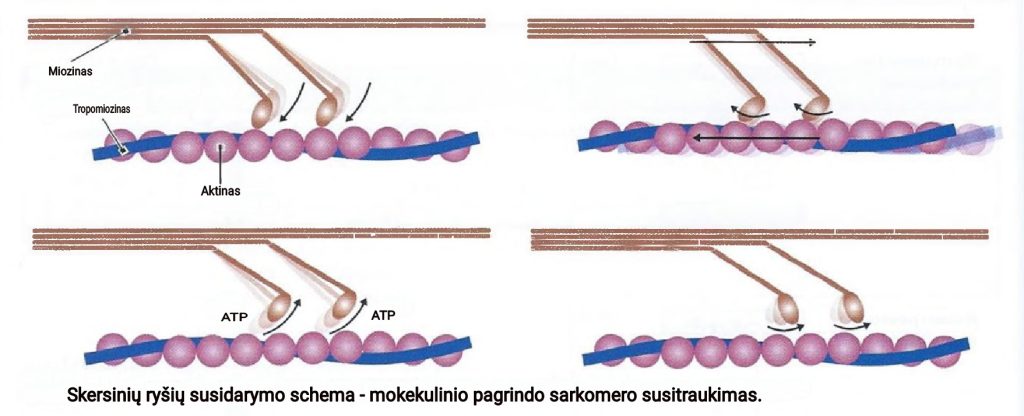
Raumuo atsipalaiduoja veikiant Ca2+ jonų siurbliams, kurie grąžina kalcio jonus į cisternas iš citoplazmos prieš koncentracijos gradientą. Trūkstant energetinių resursų, raumeniui nuvargus, sutrinka Ca2+ jonų siurblių veikla ir raumuo gali būti ilgai spazmiškai susitraukęs.
Raumens veiklai būtina ATP energija. Ji išsiskiria, kai ATP skyla į ADP ir neorganinį fosforą. Išsiskyrusi energija panaudojama aktino siūlams slinkti ir Ca2+ bei Na+ -K+ jonų siurblių veiklai. Raumenyje ATP atsargos yra nedidelės. Juose nuolat susidaro naujos ATP molekulės – vyksta ATP resintezė.
ATP sintezuojasi anaerobinėmis ir aerobinėmis sąlygomis. Anaerobinės reakcijos metu iš kreatinfosfato ir gliukozės susidaro trys naujos ATP molekulės, be to, kaupiasi pieno rūgštis. Ji didina terpės rūgštingumą ir mažina raumeninių ląstelių dirglumą.
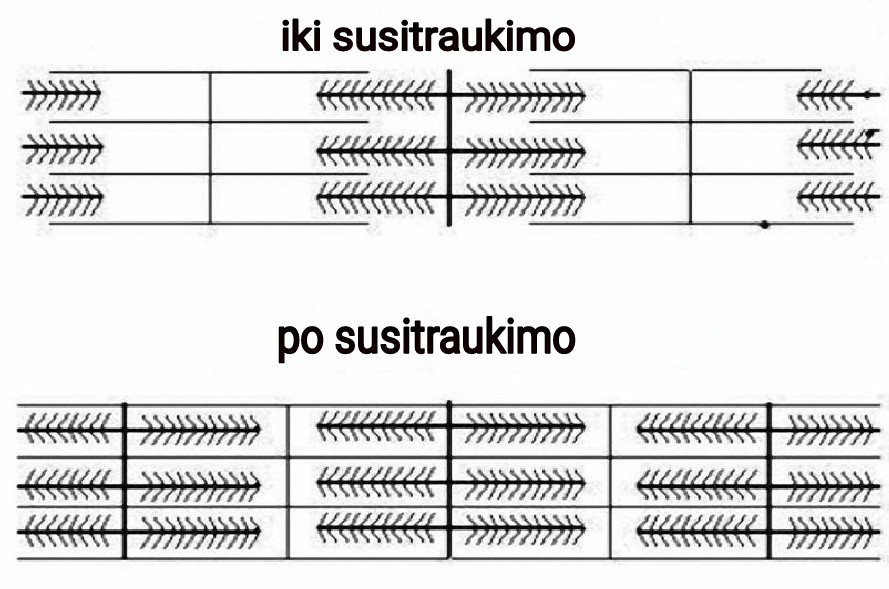
Raumens susitraukimo jėga priklauso nuo skersinių tiltelių, esančių tarp miozino ir aktino, raumeninių skaidulų kiekio bei jų išsidėstymo krypties. Daugėjant skersinių tiltelių, didėja ir raumens susitraukimo jėga. Kuo didesnis raumeninių skaidulų kiekis traukiasi, tuo raumuo išvysto didesnę susitraukimo jėgą. Susitraukiant visoms skaiduloms, raumuo išvysto absoliučią jėgą. Raumeninės skaidulos gali būti išsidėsčiusios lygiagrečiai, išilgai raumens ašies arba plunksnos pavidalu, įstrižai. Įstrižinės skaidulos padidina raumens fiziologinio skerspjūvio plotą ir suteikia raumeniui didesnę jėgą.
Raumenų darbingumas priklauso nuo: 1) krūvio dydžio; 2) darbo ritmo; 3) treniruotumo; 4) judesių automatėjimo.
Daugiausiai darbo raumuo atlieka ir ne taip greitai pavargsta dirbdamas vidutiniu apkrovimu ir vidutiniu raumenų susitraukimo ritmu. Raumenų nuovargis – tai raumenų susitraukimo jėgos mažėjimas. Žmogui dirbant ilgesnį laiką, raumenyse mažėja: ATP resursai; kaupiasi rūgštūs metabolitai (pieno rūgštis, H+ jonai); nervo raumens sinapsėje mažėja mediatoriaus acetilcholino kiekis.
Ištrauka paimta iš: Vida Elijošaitienė, Irena Šlekienė/ ŽMOGAUS RAUMENYS.
Slystančių filamentų mechanizmo teoriją pasiūlė mokslininkai Huxley ir Hanson (Huxley, 1974; žr. pav.). Raumenų sutrumpėjimas atsiranda dėl jį sudarančių sarkomerų sutrumpėjimo, o pastarosios savo ruožtu trumpėja dėl aktino ir miozino filamentų slydimo vienas kito atžvilgiu (o ne dėl pačių baltymų trumpėjimo). Susitraukiantys raumens elementai, aktinas ir miozinas, patys negali sutrumpėti. Raumenų sutrumpėjimas atsiranda dėl miofilamentų slydimo vienas kito atžvilgiu (filamentų slydimo mechanizmas).
Raumenų skausmas po sporto treniruotės (santrauka).
Raumenų skausmas gali atsirasti, jei fizinio krūvio metu jie buvo pernelyg įtempti ir pažeistos skaidulos. Jas dirgina pieno rūgštis, sukelianti aštrų raumenų skausmo pojūtį. Dar skausmą sukelia pernelyg didelis raumenų tempimas. Skausmas raumenyse atsiranda praėjus 8-12 val. po krūvio ir tęsiasi 24-72 val. Skaudantys raumenys tampa jautrūs prisilietimui, sumažėja jų elastingumas, judesių amplitudė bei raumenų susitraukimo jėga.
Jei anksčiau gana populiari nuomonė, paaiškinanti raumenų skausmą, buvo ta, kad raumenyse intensyvaus fizinio krūvio metu kaupiasi pieno rūgštis, trukdanti raumenims susitraukti ir sukelianti skausmą, tai dabar vis labiau plinta hipotezė, kad raumenų skausmas susijęs su mechaniniais raumenų ir jungiamojo audinio pažeidimais.
Pagal šią hipotezę dėl sunkaus fizinio krūvio raumenyse sutrūksta silpniausi struktūriniai vienetai – miofibrilių Z diskai. Dėl įtempto krūvio nuo Z diskų gali atitrūkti plonosios aktino gijos. Pažeistas raumenines skaidulas galima nustatyti pagal šiuos požymius: ultrastruktūros pokyčius, raumenų fermentų padaugėjimą kraujyje, Ca+ pusiausvyros sutrikimą tarpląstelinėje erdvėje. Tačiau šie požymiai nėra skausmo priežastis, nes jų atsiradimas nesutampa su skausmo pojūčių atsiradimu.
Todėl viena iš pagrindinių raumenų skausmo funkcijų yra organizmo audinių apsaugos funkcija. Tuoj po krūvio raumenys „savo jėgomis“ susidoroja su patologiniais reiškiniais, todėl skausmas nepasireiškia. Pažeidimams didėjant, atsiradęs skausmas mobilizuoja visas nervų, endokrinines, širdies, kraujagyslių sistemų jėgas tiems patologiniams dirgikliams pašalinti. Kuo daugiau raumenyse resintezuojama glikogeno, tuo greičiau praeina raumenų skausmas. Vadinasi, sportininkas atsigavimo metu turi vartoti daug angliavandenių. Tačiau vėluojančio raumenų skausmo sindromo kilmė dar nėra visiškai aiški.
Atsižvelgiant į visas skausmo kilmę aiškinančias teorijas, vėluojančio skausmo „iniciatorius“ yra ekscentriniai pratimai. Būtent toks pratimų atlikimo būdas sukelia didžiausią raumenų skausmą. Bėgimas nuokalne, lipimas laiptais žemyn, šuoliai žemyn nuo paaukštinimo, pritūpimo pratimai su partneriu – tokių pratimų metu pažeidžiamos raumenų skaidulos. Manoma, kad ten prasideda uždegimo procesai, kurie ir yra raumenų skausmo priežastis.
Galiausiai buvo nustatyta, kad vėluojančio skausmo priežastys yra šios:
– raumenų fermentų koncentracijos padidėjimas plazmoje;
– mioglobino atsiradimas kraujyje;
– raumenų histologijos ir ultrastruktūros anomalija.
Dėl šių priežasčių ilgainiui atsiranda raumenų „remonto“ būtinybė. Toliau šis reiškinys pereina į raumenų hipertrofiją.
Ištrauka paimta iš: Kazys Milašius/ Sporto fiziologija.
Nėra skausmo, nėra rezultato!
Šis posakis labai paplitęs sporto salėse. Bet kaip ten bebūtų, skausmo atsiradimas po treniruočių raumenyse iš tikrųjų rodo apie raumenų struktūrų pažeidimus. Tokiu būdu, remiantis šiuo posakiu, galime įtarti, kad raumenų augimas tiesiogiai surištas su raumenų mikrotraumomis, kurios atsiranda treniruotės eigoje. Idėja, kad mechaninis raumenų struktūrų pažeidimas jėgos treniruočių metu yra pagrindinis anabolinių procesų raumenyse sukėlėjas, laikoma dominuojančia teorija visoje jėgos lavinimo literatūroje. Kaip šios teorijos besilaikantys specialistai paaiškina mikrotraumų kilmę?
Organizmas yra savireguliuojanti sistema, per milijonus evoliucijos metų suderinta palaikyti vidinės aplinkos pastovumą. Organizmo vidinių struktūrų sugriovimai automatiškai sukelia procesus, kuriais siekiama atkurti prarastą pusiausvyrą. Taigi, ląstelių baltymų struktūrų sunaikinimas turėtų aktyvuoti atkuriamuosius baltymų sintezės procesus, sudarant visas būtinas sąlygas jiems vykti.
Faktas yra tas, kad pažeistuose audiniuose baltymų sintezės aktyvumas yra kelis kartus didesnis nei įprastomis sąlygomis. Intensyvūs atsistatymo procesai negali sustoti iš karto po to, kai pažeistos struktūros yra atstatomos. Kaip ir visi kiti procesai, baltymų sintezė turi tam tikrą inerciją. Todėl atsistatymo metu atsiras perteklinis anabolizmas, dėl kurio baltymų kiekis ląstelėje viršys pradinį lygį. Kitaip tariant, įvyks superkompensacija – reiškinys, gerai žinomas kaip energijos išteklių atkūrimas. Tai yra, ląstelių baltymų struktūrų atkūrimui galioja tie patys bendrieji adaptacijos dėsniai.
Raumenų pažeidos atsiradimo teorija.
Atkreipiame dėmesį, kad skirtingi tyrėjai šia teoriją dėsto kiek skirtingai. Žemiau pateiktame pavyzdyje yra viena iš tokių teorijų, kuri galėtų atspindėti realią padėtį.
Pirmoje fazėje, dar prieš prisijungiant prie aktino, miozino tiltelio galvutė savyje perneša ATP. Antroje fazėje, veikiant fermentui ATPazei, ATP hidrolizuojamas, skylant į ADP ir neorganinį fosfatą. Tai vyksta su miozinu, kuris nėra prisijungęs prie aktino, po to miozino galvutė gali prisijungti prie aktino – trečioji fazė.
Tiltelio darbinio žingsnio atlikimui naudojama energija, išlaisvinta ATP hidrolizės produktų disociacijos metu. Didžioji dalis energijos išsiskiria neorganinio fosfato išlaisvinimo metu (perėjimas iš trečios į ketvirtą fazę), ir mažesnė dalis – ADP išsiskyrimo metu (perėjimas iš ketvirtos į penktą fazę).
Penktoje fazėje, tiltelis standžioje būsenoje, jis nebegeneruoja jėgos, bet lieka sujungtoje būsenoje, jį išlaisvinti iš šios būsenos gali tik ATP molekulė. Absorbuodamas ATP, miozino galvutė pereina į šeštą fazę, po kurios ji atsiskiria nuo aktino ir grįžta į pradinę būseną (pirmą fazę).
Analizuojant miozino tiltelio judesio fazes, reikia atkreipti dėmesį į tai, kad tiltelio atjungimui nuo aktino yra reikalinga ATP molekulė. Kai miozino filamentai slysta išilgai aktino, veikiant traukiančių tiltelių jėgoms (teigiamas judėjimas) arba veikiant išorinei jėgai (neigiamas judėjimas), sujungti tilteliai išsitempia ir trukdo judėjimui. Tai paaiškinama skaidulų išvystomos jėgos skirtumą pailgėjimo ir susitraukimo bei susitraukimo skirtingu greičiu. Kai raumenyse yra pakankamas ATP kiekis, tilteliai spėja laiku atsijungti. Bet kas nutinka, jei, ATP koncentracijai raumenyje mažėjant, ATP molekulė nespėja atsiskirti miozino galvutės, kol tiltelio tempimas neviršys jo tempiamojo stiprumo? Natūralu, kad tiltelis nutrūks!
Tiltelio nutrūkimo vieta yra pakankamai sąlyginė, kadangi sunku nustatyti kur yra pati grandies silpniausia vieta. Bet, kad esant nepakankamam kiekiui ATP, judesio metu turėtų vykti nefiziologiniai aktino-miozno komplekso sugriovimai yra neginčijamai.
Laikas, kurį tiltelis išlieka standžioje būsenoje, priklauso nuo to, kaip greitai ATP kontaktuos su miozino galvute. Jei ATP molekulių yra mažai, tai jos patekimo atstumas iki miozino galvutės, kuri turi atsijungti nuo aktino, pailgėja ir reakcija uždelsiama. Tokiu būdu, tiltelio standžioji būsena užsitęsia. Todėl natūralu, kuo aukštesnė ATP koncentracija, tuo mažesnis vidutinis atstumas tarp ATP molekulės ir miozino galvutės ir tuo trumpesnis laikas, kuriame tiltelis išlieka standžioje būsenoje.
Staigus raumenų aktyvumo padidėjimas iš ramybės būsenos reikalauja tokio pat staigaus energijos gamybos greičio padidėjimo.
Pagrindiniams energijos gamybos šaltiniams (glikolizei greitose skaidulose ir oksidacijai lėtose skaidulose) pasiekti maksimalų pajėgumą reikia laiko.
ATP gamybos greitis glikolizės būdu pasiekia maksimumą tik po 20–30 sekundžių nuo intensyvaus darbo pradžios.
Maksimalus oksidacijos greitis pasiekiamas per daug ilgesnį laiką, pirmiausia dėl to, kad reikia optimizuoti deguonies tiekimo procesus. Oksidacijos greitis pasiekia maksimumą tik po 1–2 minučių raumenų darbo – šis efektas dažnai vadinamas kaip „antrasis kvėpavimas“.
Tuo tarpu raumuo, gavęs susitraukimo komandą, išvysto maksimalią galią nuo pat pirmųjų sekundės dalių. Glikolizė kartu su oksidacija negali užtikrinti reikiamo ATP gamybos greičio šiai galiai palaikyti.
ATP suvartojimo ir gamybos greičių suderinimas raumenų darbo metu vyksta dviem būdais. Pirma, laipsniškas glikolizės ir oksidacijos aktyvavimas padidina iš šių šaltinių per laiko vienetą susintetinamo ATP kiekį.
Antra, metabolinių produktų kaupimasis dėl glikolizės ir oksidacijos sumažina miozino ATPazės aktyvumą ir atitinkamai ATP suvartojimo greitį.
Dėl šių dviejų procesų ATP suvartojimo ir gamybos greičiai yra išlyginami, o judėjimas tęsiasi palaipsniui mažėjančia galia, tačiau esant pusiausvyros būsenai tarp susintetinto ATP kiekio ir raumens energijos poreikių. raumenų atsakas atsiranda ne dėl ATP atsargų išeikvojimo, o dėl raumenų susitraukimo gebėjimo sumažėjimo, rūgštinių medžiagų apykaitos produktų kaupimosi pasekoje.
Iki energijos sąnaudų ir gamybos greičių išsilyginimo, ATP deficitą padengia raumenyse esantis kreatino fosfatas. Kitaip tariant, kreatino fosfatas veikia kaip energijos buferis, išlyginantis ATP gamybos ir suvartojimo tempų neatitikimus sparčiai didėjant krūviui. Kasdieniame gyvenime retai kada išnaudojame savo raumenis iki jų energetinių galimybių ribos, todėl jiems užtenka nedidelio kreatino fosfato ir fermentų kiekio, kurie užtikrina glikolizės ir oksidacijos reakcijas, kurių pakanka kasdieniam gyvenimui.
Pradėjus nuolat sportuoti, raumenys būna nepasiruošę atsiradusiai apkrovai. O jei krūvis yra gerokai didesnis nei įprastai, kreatino fosfato atsargos pirmosiose darbą pradedančiose skaidulose greitai išsenka, dar prieš tai, kai glikolizė greito susitraukimo skaidulose ar oksidacija lėto susitraukimo skaidulose pasiekia pakankamą ATP gamybos greitį. Tokiu būdu, dėl intensyvaus energijos suvartojimo ir nepakankamos jos gamybos kai kuriose skaidulose ATP lygis nukrenta žemiau kritinio lygio. O kadangi judesys tęsiasi veikiamas kitų skaidulų arba išorinės jėgos (neigiamo judėjimo atveju), šių skaidulų miofibrilių jungtys griaunamos.
Štai pagrindinė treniruočių streso paslaptis: raumenų skaidulų mikrotraumos atsiranda, kai kreatino fosfato atsargos išeikvojamos anksčiau, nei ATP gamybos glikolizės ir oksidacijos būdu greitis tampa lygus ATP suvartojimo greičiui.
Tai paaiškina faktą, kad treniruočių poveikis greitoms skaiduloms pasiekiamas intensyviai dirbant nuo 7 iki 30 sekundžių. Jei apkrova leidžia išlaikyti reikiamą raumens susitraukimo jėgą ilgiau nei 30 sekundžių, tai energijos sąnaudos raumenyje greičiausiai nebus pakankamai didelės, kad ATP koncentracija sumažėtų žemiau kritinio lygio. Šiuo atveju raumenų atsakas atsiranda dėl rūgštinių medžiagų apykaitos produktų kaupimosi ir yra fiziologiškai normalus reiškinys, nesukeliantis raumeniui streso.
Kai krūvis didelis, bet gali trukti ne ilgiau kaip kelias sekundes (2–3 pakartojimai), susidaro kitoks vaizdas. Energijos sąnaudų greitis yra gana didelis, tačiau atsakas, kurį sukelia nedidelis skaidulų stiprumo sumažėjimas dėl medžiagų apykaitos produktų kaupimosi ir ATP koncentracijos sumažėjimo (bet ne žemiau kritinio lygio), įvyksta dar prieš išeikvojant kreatino fosfato atsargas, ir stresas neatsiranda. Akivaizdu, kad taikant tokio tipo raumenų apkrovos režimą neįmanoma pasiekti mikrotraumų oksidacinėse (lėtose) skaidulose.
Lėtai susitraukiančiose skaidulose ATP suvartojimo greitis yra žymiai mažesnis nei greitai susitraukiančiose skaidulose, todėl kreatino fosfato atsargos eikvojamos palaipsniui. Ir, galbūt, lėtųjų skaidulų mikrotraumos būtų praktiškai neįmanomos, jei oksidacinių procesų aktyvavimas užtruktų tiek pat laiko, kiek ir glikolizės aktyvavimas. Bet, kaip jau minėta anksčiau, maksimali ATP gamyba dėl oksidacijos stebima tik po 1–2 minučių darbo, todėl yra tikimybė sukelti mikrotraumas lėtose skaidulose, jei pavyks pasiekti ATP deficitą intensyvios apkrovos metu 1–2 minučių bėgyje.
Raumenų pažeidos atsiradimo teorijos analizavimas ir kritika.
Šią raumenų mikrotraumų (pažeidos) gavimo teoriją galima sutapatinti su visiem žinomu fiziologiniu reiškinių kaip skausmu raumenyse po treniruočių, dar vadinamu uždelstu arba vėluojančiu raumenų skausmu (angl. sutrump. DOMS). Po treniruotinis skausmas ypač stiprus po pirmųjų užsiėmimų sportu ir dažniausiai išnyksta po reguliarių treniruočių. Na dažniausiai vėl atsiranda po ilgos pertraukos nuo treniruočių.
Šį reiškinį galima paaiškinti taip – pagrindinė reakcija į treniruotę, be padidėjusios baltymų sintezės, yra kreatino fosfato kaupimasis raumenyse ir glikolizės bei oksidacijos fermentų koncentracijos bei aktyvumo padidėjimas. Su kiekviena treniruote didėja santykinis kreatino fosfato kiekis raumenų skaidulose, kartu didėja ir glikolizės bei oksidacinių reakcijų galia. Dėl to vis sunkiau išeikvoti kreatino fosfato atsargas, kol ATP suvartojimo ir atkūrimo iš pagrindinių energijos šaltinių tempai nesusilygins, o esant aukštam treniruočių lygiui tai praktiškai neįmanoma.
Remiantis šiais teiginiais, būtų galima padaryti logišką išvadą:
Kreatino fosfato kaupimasis ir glikolizės bei oksidacijos pajėgumų padidėjimas dėl treniruočių, viena vertus, padidina raumenų jėgą ir skatina jų našumo didėjimą, kita vertus, gali stabdyti nuo stresinių situacijų susidarymo ir sumažina treniruočių poveikį raumenims, taip sulėtindamas tolesnes adaptacines reakcijas. Teiginys kaip ir turintis savo vietą būti, bet nereikia pamiršti, kad raumenų jėga auga dėl miofibrilių hiperplazijos, o raumenų našumas yra abstrakti savoka.
Iš pirmo žvilgsnio ši teorija atrodo labai logiška ir natūrali, bet šiuolaikiniai moksliniai tyrimai ir praktinė sporto patirtis neigia aktino-miozino tiltelių vientisumo sutrikimo (pažeidimo) faktą mechaninio atsiskyrimo metu (sąmoningai vengiu žodžio „plyšimas“), nes miozino tiltelio struktūrinis stiprumas viršija jo sukibimo su aktino gijos stiprumą.
Kai aktyvus raumuo yra ištemptas ir aktino-miozino tilteliai negali atsijungti ATP energijos sąskaita, tilteliai lieka nepažeisti, o sausgyslėse kaupiasi tamprios deformacijos energija. Ši „tampri“ energija yra sportinės technikos efektyvumo gerinimo pagrindas, pavyzdžiui, bėgime, čiuožime, šuoliuose į tolį, šuoliuose į aukštį, keliant štangą ant krūtinės, rovime.
Tačiau, padidėjus aktyvių raumenų skaidulų tempimo laipsniui, kol tilteliai atsiskiria, energija išsisklaido. Akivaizdu, kad treniruotiems raumenims didelė žala nepadaroma. Tai galima spręsti iš lengvosios atletikos šuolininkų, ypač trišuolininkų, patirčių, kurie nepatiria raumenų skausmo, nepaisant didžiulių išorinių apkrovų.
Aukščiau pateiktą daugiapakopę ATP molekulės energijos sąnaudų schemą aktino-miozino tilto veikimo metu galima pavadinti abejotina. Šiuo metu šis procesas nagrinėjamas dviem etapais.
Tiltelio susidarymui energijos sąnaudų nereikia, tačiau jo atjungimui reikalinga ATP energija arba išorinė mechaninė energija. Dalinai, leidžiantis laiptais, kojų raumenų veiklai sunaudojama medžiagų apykaitos energija beveik lygi nuliui, todėl atėmus medžiagų apykaitos energiją vidaus organų darbui, teigiamo poveikio koeficientas viršija 100 %. Bet atminkite, jei reguliariai leidžiatės, tarkime, iš šešto aukšto, ar jums skauda raumenis? Ko gero ne. Tai reiškia, kad raumenų pažeidimams reikia intensyvaus raumenų tempimo ir ilgo laiko, kad mikrotraumos sumuotus.
Kai trūksta ATP molekulių, kaupiasi ADP, fosforo ir vandenilio jonai. Vandenilio jonų atsiradimas miofibrilėse neleidžia kalcio jonams prisijungti prie aktino, sumažindamas tiltelių susidarymo tikimybę – raumeninių skaidulų traukos jėga krenta. Todėl, ATP trūkumas nėra ribojantis veiksnys tiltelių funkcijai (jei tiltelių nėra). Be to, dėka kreatino fosfato atsargų ATP molekulės yra vėl resintetinamos per 0,1–0,5 sekundės.
ATP koncentracija raumenų skaidulose atliekant jėgos pratimą mažėja, bet ramybės būsenoje atsistato kreatino fosfato pagalba iki 90-100 % per 0,1-1,0 sekundės. Todėl iki sekančio susitraukimo ATP koncentracija raumenų skaidulose artėja prie 100 %.
Raumenų atsako momentu, nuo svorio kėlimo pradėjimo, sumažėja ATP ir kreatino fosfato koncentracija raumenų skaidulose. Atsakas atsiranda dėl rūgštėjimo (dėl nepakankamo ATP atsistatymo ir anaerobinės glikolizės aktyvacijos) ir negebėjimo įtraukti naujų raumeninių skaidulų.
Svarstymai apie anaerobinę glikolizę neturi rimto pagrindo, nes šios sąvokos yra pagrįstos vadovėliais, kuriuose pateikiami neteisingai interpretuoti duomenys iš eksperimentų, kuriuose buvo matuojama deguonies stoka. Tikrasis glikolizės pajėgumas neviršija 6% tam tikro raumens aerobinio pajėgumo.
Jėgos treniruočių metu raumenų ATP lygis palaipsniui mažėja. Didelio intensyvumo pratimų metu ATP koncentracijos sumažėjimo žemiau kritinio lygio nepastebėta nuo 7 iki 30 sekundžių.
Mechaninis miofibrilinių struktūrų pažeidimas jokiu būdu nėra raumenų augimą skatinantis veiksnys. Yra tik keturi pagrindiniai veiksniai, sukeliantys miofibrilinę hiperplaziją: padidėjęs aminorūgščių kiekis kraujyje, padidėjusi anabolinių hormonų koncentracija ląstelėje, padidėjęs laisvojo kreatino kiekis ir padidėjęs, bet ne per didelis, vandenilio jonų kiekis.
Neseniai fiziologai nustatė faktą, kad raumenų tempimas turi įtakos raumeninėse skaidulose susidaryti iRNR, kuri yra atsakinga už miofibrilų sintezę. Tačiau šie duomenys gauti tiriant gyvūnus, kuriems buvo atliekamos operacijos ir kurie patyrė didelį stresą, todėl miofibrilų masės padidėjimas labiau susijęs su streso hormonų (augimo hormono, testosterono) poveikiu. Deja, šis poveikis nebuvo įvertintas fiziologiškai, o tai, jėgos atleto požiūriu, yra tiesiog netikslu. Tai prieštarauja pagrindiniams biologijos dėsniams.
Mikrotraumos įvyksta ne dėl pažeidimo, o dėl visiško miofibrilių plyšimo. Raumenų ląstelėse miofibrilės auga ir nuolat atsinaujina. Tai itin ploni siūlai. Primename, kad raumens ląstelės (skaidulos) skersmuo yra kelios šimtosios milimetro dalys, o kiekvienoje ląstelėje yra iki 2000 miofibrilių.
Taigi, be reguliaraus fizinio krūvio, ląstelės miofibrilės auga chaotiškai. Jos gali būti įvairaus ilgio ir išsidėsčiusios tam tikrais kampais viena kitos atžvilgiu. Tai ypač pastebima greitosiose raumenų skaidulose, kurios retai panaudojami kasdieniame gyvenime. Todėl, kai pradedantysis treniruojasi ir atlieka jėgos pratimus, trumpos ir netinkamai susiliejusios miofibrilės priešinasi tempimui ir todėl plyšta.
Kai plyšta miofibrilės, baltymų molekulės, susidaro radikalai, t. y. užtaisai. Prie šių užtaisų prisitvirtina vanduo. Dėl to raumenų skaidulose atsiranda surištas vanduo ir susidaro laisvo vandens trūkumas. Vanduo patenka į raumenų skaidulas, todėl padidėja ląstelės tūris, membranos ištempiamos, ir ten skausmo receptoriai siunčia signalą į smegenis apie skausmą.
Tai paaiškina potrauminį skausmą. Reguliariai treniruojantis, greitųjų raumenų skaidulų miofibrilėse vyksta natūrali atranka. Naujai susiformavusios miofibrilės sunaikinamos, jei jos plyšta tempimo ar ekscentrinių pratimų metu, o ilgosios miofibrilės išgyvena. Todėl miofibrilės išsilygina išilgai ir lygiagrečiai viena kitai. Po to skausmas po treniruotės nebegali atsirasti, nes niekas neplyšta. Būtent miofibrilų išsidėstymas (išlyginimas) ląstelėje yra ta priežastis dėl ko išnyksta skausmas po treniruotės, o ne padidėjęs raumens skaidulų energijos potencialas.
Mokslininkai netgi pateikė konkretų skaičių: 49 dienos. Jei sportininkas tiek laiko pertraukia treniruotes, raumenų skaidulose vėl atsiranda „neteisingos“ miofibrilės, kurios treniruotės metu plyšta, ir sportininkas vėl pradeda jausti skausmą po treniruotės.
Kadangi mikrotraumų susidarymo procesas nėra raumenų augimą skatinantis veiksnys, idėjos apie tinkamą lėtųjų raumenų skaidulų treniruotę taip pat yra neteisingos. Nereikia pasiekti ATP deficito atliekant intensyvius pratimus 1–2 minučių bėgyje. Be to, tokie pratimai būtų visiškai nenaudingi raumenų hipertrofijai. Kaip jau minėta, reikiamą raumenų skaidulų rūgštėjimą galima pasiekti tik atliekant pratimus statiniu-dinaminiu režimu. Tai yra, be raumenų atsipalaidavimo.
Beje, kodėl treniruoti sportininkai, atlikę statinius-dinaminius pratimus, net ir lavinamojo režimo metu, nejaučia skausmo po treniruotės? Taip yra todėl, kad judesys vyksta sutrumpintu judesių diapazonu, o trumpos miofibrilės nėra ištemptos iki ribos ir neplyšta.
Ir dar vienas niuansas. Iki šiol biochemijoje buvo manoma, kad ATP koncentracijos pokyčiai yra ląstelių aktyvacijos stimulas. Tai tiesa, tačiau ATP ir ADP nepašalinami nuo savo panaudojimo vietos, todėl pagrindinis glikolizės ir oksidacinio fosforilinimo aktyvacijos šaltinis yra kreatino fosfatas. Būtent kreatinas ir neorganinis fosfatas laisvai juda visoje ląstelėje, suranda kitas ATP molekules, pavyzdžiui, mitochondrijų, kas ir verčia mitochondrijas iš naujo resintetinti naujas ATP molekules (stimuliuojami medžiagų apykaitos procesai).
Kreatino fosfato molekulė yra daug kartų mažesnė už ATP molekulę. Kai kurie biochemikai (pvz., Engelhardas, Mersonas, Volkovas ir kiti) manė, kad ląstelė tai yra didžiulė erdvė, kurioje visos molekulės gali laisvai judėti. Nieko panašaus. Ląstelės viduje yra per daug membranų, o didelės molekulės, tokios kaip ATP, negali laisvai judėti. Šis atradimas reikšmingai pakeičia dabartinę biochemijos ir bioenergetikos padėtį, todėl daugelį klausimų reikia iš esmės persvarstyti.
Apibendrinant galima pasakyti, kad įvairių sporto šakų sportininkų fizinio rengimo problema yra susijusi su pasenusia sportinio rengimo teorija. Daugelis fizinio paruošimo teorijų buvo suformuluotos dar 60 -ųjų metu pradžioje. Šiuo laikotarpiu biologinės informacijos apie sportininkų judesio aktyvumo mechanizmus nepakako, todėl sporto rengimo teorija buvo kuriama empiriniu pagrindu; autoriams reikėjo sugalvoti hipotezes, kurios vėliau tapo nusistovėjusiomis pozicijomis, nors iš pradžių jos nebuvo pagrįstos eksperimentiškai ir biologiškai (teoriškai).
Ir šie neteisingi apibendrinimai bei klaidingos išvados buvo kopijuojami iš vadovėlio į vadovėlį daugiau nei pusę amžiaus, o šiuolaikiniai moksliniai biologiniai tyrimai tebėra apsiribojantys labai specializuotais moksliniais leidiniais ir nėra prieinami ne tik plačiajai auditorijai, bet net ir knygų sporto temomis leidėjams. Ir atotrūkis tarp teorijos, biologijos mokslų ir praktikos toliau didėja. Šiuolaikinis mokslas nuolat vystosi. O norint sukurti modernias hipotezes ir modelius, būtina nuolat neatsilikti nuo naujausių mokslo pokyčių. Šaltinis: „Geležinis pasaulis“ 2013 m. Nr. 11
Išvada.
Kaip matome iš pateiktos informacijos aukščiau, raumenų skaidulų mikrotraumos (pažeidos) atsiradimo teorijų yra keletą, vienos jos šiek tiek senstelėjusios, kitos dar tik analizuojamos. Kiekvienas tyrėjas stengiasi paaiškinti iš savo analizių pusės. Kaip ten bebūtų, ar pažeida įvyksta energetinių ar medžiagų apykaitos pokyčių eigoje, dėl mechaninių ar fizinių priežasčių, ar dėl visų veiksnių iškart, bet ji vienokiu ar kitokiu būdu atsiranda.
Stebint profesionalius sportininkus matome, kad raumenų atsakas ir jų pažeida yra vienas iš galimų metodų kaip stimuliuoti raumenų adaptacinius procesus skatinant jų augimą. Beje, vėluojantis raumenų skausmas po treniruočių atsiranda ne tik pradedantiesiems sportininkams. Bet tai nėra neginčijamas raumenų pažeidos ir jų augimo stimuliavimo požymis, kadangi yra tokių atveju, kad profesionalūs sportininkai gali augti ir nepasiekdami raumenų atsako bei jų pažeidos, taipogi nejausti vėluojančio skausmo.
Išvada viena, tai kas aprašyta aukščiau turi tam tikrą poveikį atsirasti raumenų skaidulose mikrotraumas, apie tai signalizuoja energijos trūkumo atsiradimas ir pojūčiai raumenyse. Mūsų organizmas turi su tuo susitvarkyti ir tokiu būdu prasideda adaptacija, kompensacija ir superkompensacija, dėl kurios mes tampame stipresni, greitesni ir didesnis. Čia svarbiausiai pasirinkti tinkamą tikslo įgyvendinimo būdą ir kokią savybę labiausiai siekiame išlavinti.