Pradžioje pradėkime nuo riebalinių rūgščių apykaitos. Riebalinės rūgštys į organizmą patenka su maistu arba yra sintetinamos (išskyrus polieninės rūgštys). Dažnai substratai, kurie yra reikalingi sintetinti riebalines rūgštis, susidaro gliukozės katabolizmo metu. Tokiu būdu, dalis gliukozės pirmiausiai virsta į riebalines rūgštis ir tik po to į riebalus. Nors riebalinių rūgščių specifinis katabolizmo procesas pasibaigia susidarant acetil-KoA, kuris naudojamas kaip pradinis riebalinių rūgščių sintezės substratas, riebalinių rūgščių sintezės ir oksidacijos procesai yra negrįžtami. Jie vyksta skirtingose ląstelės dalyse (biosintezė vyksta citozolyje, o oksidacija – mitochondrijose) ir katalizę atlieka skirtingi fermentai.
Riebalinių rūgščių oksidacija, kaip energijos išteklių šaltinio, padidėja postabsorbciniu periodu, badaujant ir fiziškai dirbant. Šiose būsenose jų koncentracija kraujyje padidėja mobilizacijos iš riebalinių atsargų eigoje, po ko jos aktyviai oksiduojamos kepenimis, raumenimis ir kitais audiniais. Badaujant dalis riebalinių rūgščių kepenyse perdaromos į kitokias energetines molekules – ketoninius junginius. Jie, skirtingai nuo riebalinių rūgščių, gali būti panaudojami energijos šaltinių nerviniame audinyje. Badaujant ir ilgai dirbant fizinį darbą ketoniniai junginiai panaudojami kaip energijos šaltinis raumenyse ir kai kuriuose kituose audiniuose.
Taigi, apibendriname: laisvųjų riebalinių rūgščių oksidacija intensyviai vyksta kepenų, inkstų, širdies raumens, griaučių raumenų, riebalinio audinio ir kt. ląstelėse. Smegenyse bei nerviniame audinyje jos oksiduojamos silpnai (smegenų pagrindinė energijos medžiaga yra gliukozė).
Toliau kiek panagrinėkime pačią oksidacijos esmę. Praleidus visus šių procesų visumos aspektus (pvz., reakcijų eigą, joje dalyvaujančių junginių veikimo mechanizmus, veikimo būdus ir t.t. ir t.t.) galima pasakyti, kad šio specifinio riebalinių rūgščių katabolizmo metu, nuo jos acil-KoA galo paeiliui yra atskeliamas dviejų anglies atomų fragmentas acetil-KoA pavidalu. Atskėlus acetil-KoA ir riebalų rūgščiai sutrumpėjus dviem anglies atomais vėl yra oksiduojamas anglies atomas ir procesas kartojamas. Toks oksidacijos mechanizmas vadinamas β-oksidacija.
Šis metabolinis β-oksidacijos būdas būtent taip vadinasi todėl, kad riebalinės rūgšties oksidacijos reakcija vyksta oksiduojant anglies β atomą. β-oksidacijos reakcijos ir po to sekanti acetil-KoA oksidacija trikarboksirūgščių cikle (Krebso arba citrinos rūgšties ciklas) yra pagrindinis energijos išteklius ATP sintezėje. Riebalinių rūgščių β-oksidacija vyksta tik aerobinėse sąlygose.
Nors viso oksidacijos proceso neaprašinėjome, reiktų įdomumo dėlei paminėti keletą svarbių momentų. Prieš tai, kai riebalinės rūgštys ims dalyvauti įvairiose reakcijose, jos turi būti aktyvintos – surištos makroerginiu ryšiu su kofermentu A. Šiose reakcijose dalyvauja specifiniai šioms reakcijoms reikalingi fermentai (pvz., acil-KoA sintetazė). Aktyvintos riebalų rūgštys gali būti naudojamos citozolyje membranų lipidų biosintezei arba pernešamos į mitochondrijų užpildą ir oksiduojamos.
Kadangi riebalinių rūgščių β-oksidacija vyksta mitochondrijų viduje, tai po jų aktyvacijos jas reikia ten kažkaip pernešti. Ilgųjų grandinių riebalų rūgštys pro mitochondrijų membranas pereina tik susijungusios su sportininkams žinomu karnitinu. Ko gero, daugelis sportininkų yra girdėję ir žino apie karnitiną, kad jį reikia vartoti „deginant” riebalus. Bet, ko gero, nedaugelis iš jų pasakytų kokiu būdu jis tiksliai padeda tuos riebalus „degint”. Atsakymas ką tik nuskambėjo. O pats karnitinas paprastai gaunamas su maistu arba sintetinamas organizme (kepenyse ir inkstuose) iš lizino ir metionino.
Beje, karnitino sintezės reakcijose yra reikalingas vitaminas C (askorbo rūgštis). Visuose šiuose procesuose vėlgi dalyvauja specifiniai fermentai, pvz., karnitino aciltransferazė І (KAT І) arba karnitino aciltransferazė ІІ (KAT ІІ). Kodėl šiuos fermentus aplamai paminėjome paaiškės kiek vėliau. Aiškumo dėlei dabar galima pasakyti tai, kad KAT І yra mitochondrijų išorinės membranos citozolio pusėje ir katalizuoja reakciją, kurios metu acil-KoA reaguoja su karnitinu. Acilgrupė prisijungia prie karnitino hidroksigrupės ir susidaro acilkarnitinas, kuris jau gali būti pernešamas pro išorinę membraną.
Tolimesniuose etapuose, pernešant acilkarnitiną pro vidinę membraną naudojami dar kiti fermentai, padedant KAT ІІ užpilde acilgrupė nuo acilkarnitino perkeliama ant KoASH. Tokiu būdu acil-KoA įveikia savo kelionę ir yra atiduodamas β-oksidacijos fermentų poveikiui. Beje, laisvas karnitinas yra gražinamas į vidinės mitochondrijų membranų užpildo pusę.
Kaip jau suprantame, riebalinių rūgščių oksidacija yra svarbus energijos šaltinis daugelyje audinių. Šie audiniai yra su aukštu trikarbosirūgščių ciklo fermentų aktyvumu – skeleto raumenų, širdies raumens, inkstų ląstelės. Eritrocitai, kuriuose nėra mitochondrijų, negali oksiduoti riebalinių rūgščių. Riebalinės rūgštys nėra energijos išteklius smegenims ir nervų audiniams, kadangi riebalinės rūgštys ne praeina pro hematoencefalinę užtvarą, beje kaip ir kitos hidrofobinės medžiagos. Eksperimentuose pastebėta, kad riebalinių rūgščių apykaita nerviniame audinyje žymiai mažesnė negu kituose audiniuose.
β-oksidacija arba jos metabolizmas yra glaudžiai susijęs su organizme vykstančiais kai kuriais procesais, pvz., su bendro organizmo katabolizmo eiga ir kt. Dėl tos priežasties, atsižvelgiant į ląstelės energijos poreikį, ji yra reguliuojama. β-oksidacijos greitis audiniuose priklauso nuo substrato pasiekiamumo, t. y. nuo patenkančių į mitochondrijas riebalinių rūgščių kiekio. Badaujant ir veikiant gliukagonui, laisvųjų riebalinių rūgščių koncentracija kraujyje padidėja aktyvinant lipolizę riebaliniame audinyje, o fiziškai dirbant – veikiant adrenalinui. Šiais atvejais riebalinės rūgštys tampa svarbiu energijos ištekliumi raumenims ir kepenims.
Šioje vietoje skaitytojui gali kilti klausimas: kodėl taip yra? Ar energijai gauti nebūtų naudingiau naudoti gliukozę. Gal būtų ir paprasčiau, bet šiose paminėtose aplinkybėse (badaujant arba fiziškai dirbant, ypač kai tai yra ilgas monotoniškas fizinis darbas) β-oksidacijos metu susidaro NADH ir acetil-KoA, prasideda piruvato dehidrogenazės komplekso inhibicija. Kitaip sakant, piruvato perdarymas, kuris susidaro iš gliukozės, į acetil-KoA lėtėja. Kaupiasi glikolizės tarpiniai metabolitai, dalinai, gliukozės-6-fosfatas. Gliukozės-6-fosfatas inhibuoja heksokinazę ir tai stabdo gliukozės panaudojimą glikolizės procese. Tokiu būdu, išskirtinai daugiausiai, kaip pagrindinį energijos šaltinį, naudojant riebalines rūgštis raumens audinyje ir kepenyse yra išsaugoma gliukozė nervų audiniams ir eritrocitams.
Riebalinių rūgščių oksidacijos sutrikimai.
Prieš imant nagrinėti ketoninius junginius, dar trumpai paminėkime kokie yra galimi riebalinių rūgščių oksidacijos sutrikimai. Vienas iš tokių galimų sutrikimų yra riebalinių rūgščių pernešimo į mitochondrijas sutrikimas. Riebalinių rūgščių pernešimo į mitochondrijų vidų greitis, o tai reiškia ir β-oksidacijos proceso greitis ir eiga, priklauso nuo karnitino pasiekiamumo (jo, kaip aplamai tokio, buvimo) ir fermento karnitino aciltransferazės І (KAT І) veikimo greičio.
Dažniausiai pasitaikantys veiksniai, kurie gali sukelti β-oksidacijos sutrikimus:
• ilgalaikė hemodializė, kurios eigoje organizmas praranda karnitiną;
• ilgalaikė acidurija, kurios metu karnitinas yra pašalinamas kartu su organinėmis druskomis per šlapimą;
• cukriniu diabetu sergančių ligonių gydymas sulfonilkarbamidais, kurie slopina KAT І;
• žemas fermentų, kurie sintetina karnitiną, aktyvumas;
• paveldėtas KAT І defektas.
Žmonėms, kuriems nustatomas paveldėtas KAT І arba karnitino sintezės fermentų defektas, skeleto raumenyse sumažėja riebalinių rūgščių patekimo greitis į mitochondrijas, atitinkamai ir β-oksidacijos greitis. Tokiais atvejais riebalinės rūgštys su ilga grandine nėra panaudojamos kaip energijos išteklius. Tokių žmonių fizinis aktyvumas yra mažesnis; raumenų ląstelėse, sudarydamos vakuoles, gali kauptis riebalai.
Be viso to, prie sutrikimų galima paminėti ir genetinį riebalinių rūgščių dehidrogenazių defektą. Ilgai nesiplečiant – mitochondrijose yra 3 rūšys fermentų acil-KoA-dehidrogenazių, kurios oksiduoja riebalines rūgštis su ilga, vidutine arba trumpa radikalo grandine. Riebalinės rūgštys, vis trumpėjant radikalui, β-oksidacijos procese yra oksiduojamos paeiliui šiais fermentais. Bet štai pakankamai dažnai, tam tikroje geno pozicijoje atsiranda genetinis defektas (minima, kad tarp Europos gyventojų 1:40), dėl kurio sutrinka riebalinių rūgščių su vidutinio ilgio radikalų dehidrogenazių fermento veikla. Viso šito eigoje atsiranda autosominė recesyvinė liga.
Šio fermento aktyvumas ypač svarbus krūtimi maitinamiems vaikams, kuriems pieno riebalai yra pagrindinis energijos šaltinis, o pieno triacilgliceroliuose vyrauja riebalinės rūgštys su vidutiniu grandinės ilgiu. Negalėjimas riebalinių rūgščių panaudoti kaip energijos išteklių yra skatinamas gliukozės oksidacijos greičio padidėjimas. To eigoje vaikams išsivysto hipoglikemija – netikėta vaikiško mirštamumo priežastis (10 % nuo bendro naujagimių mirčių kiekio). Jei tokie vaikai išgyvena, tai po badavimo 6-8 valandų eigoje, jiems išsivysto hipoglikeminiai priepuoliai (silpnumas, galvos svaigimas, pykinimas, sąmonės praradimas). Suleidus gliukozės šie simptomai išnyksta.
Visais atvejais, kai sutrinka β-oksidacija, riebalų rūgštys kaupiasi ląstelėse ir suyra ω-oksidacijos būdu, kuri normoje vyksta labai lėtai. Šių reakcijų metu susidaro dikarboninės rūgštys, kurios pašalinamos su šlapimu. Šių rūgščių nustatymas šlapime gali būti naudojamas diagnostinių rodikliu nustatant β-oksidacijos sutrikimus.
Esant retai paveldimai ligai – Refsumo sindromui, išsivystančio vieno iš fermentų, kurie dalyvauja a-oksidacijoje, genetinio defekto eigoje. Fitano rūgštis, kuri patenka su maistu, nėra oksiduojama ir kaupiasi organizme, pagrinde nerviniame audinyje. Toks veiksnys sukelia nervinio audinio struktūros sutrikimus ir daugelį neurologinių simptomų išsivystymą.
Ketoninių junginių apykaita.
Badaujant, ilgai fiziškai dirbant ir tais atvejais, kai ląstelės negauna pakankamo kiekio gliukozės, riebalinės rūgštys yra naudojamos daugelyje audinių kaip pagrindinis energijos šaltinis. Skirtingai nuo kitų audinių, smegenys ir kitos nervinio audinio dalys praktiškai nenaudoja riebalinių rūgščių kaip energijos išteklių. Kepenyse dalis riebalinių rūgščių yra perdaromos į ketoninius junginius, kurie jau yra panaudojami smegenyse, nerviniame audinyje, raumenyse, aprūpindami pakankamu kiekiu energijos sintetinant ATP ir mažinant gliukozės vartojimą. Ketoniniams junginiams priskiriami β-hidroksibutiratas, acetoacetatas ir acetonas. Dvi pirmosios molekulės oksiduojamos audiniuose, aprūpindamos ATP sintezę. Acetonas susidaro tik esant aukštai ketoninių junginių koncentracijai kraujyje ir yra išskiriamas su šlapimu, iškvepiamu oru ir prakaitu, padeda organizmui atsikratyti nuo ketoninių junginių perteklio.
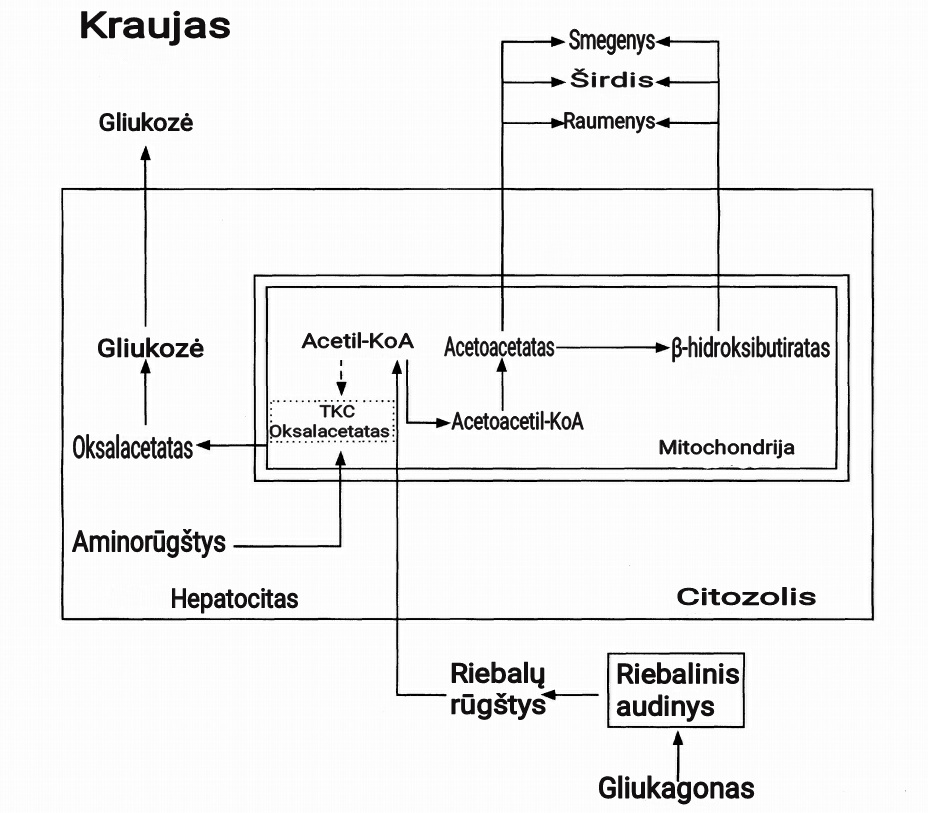
Ketoninių junginių sintezės aktyvavimas badavimo metu. Taškinė linija – metabolizmo greitis žemas; ištisinės linijos – metabolizmo greitis aukštas. Badaujant, gliukagono poveikio eigoje, riebaliniame audinyje aktyvuojasi lipolizė ir β-oksidacija kepenyse. Oksalacetato kiekis mitochondrijose sumažėja, kadangi jis, perdarytas į malatą, patenka į citozolį, kur vėl virsta oksalacetatu ir yra panaudojamas gliukoneogenezėje. To pasekoje (TKC) trikarboksirūgščių ciklo reakcijų greitis mažėja ir, atitinkamai, sulėtėja acetil-KoA oksidacija. Acetil-KoA koncentracija mitochondrijose didėja ir yra aktyvinama ketoninių junginių sintezė. Ketoninių junginių sintezė padidėja ir sergant cukriniu diabetu.
Kokiu būdu ketoniniai junginiai gaminasi?
Esant žemam insulino/gliukagono santykiui kraujyje arba tiesiog badaujant, riebaliniame audinyje aktyvuojasi riebalų skaidymas. Riebalinės rūgštys didesniais kiekiais, negu normoje, patenka į kepenis ir dėl to padidėja β-oksidacija. (žr. pav.) Trikarbosirūgščių ciklo reakcijų greitis šiomis sąlygomis yra sumažėjęs, kadangi oksalacto rūgštis naudojama gliukozės sintezei ir negali kondensuotis su acetil-KoA. Visa to eigoje acetil-KoA susidarymo greitis viršija trikarboksirūgščių ciklo gebėjimą jį oksiduoti. Acetil-KoA ima kauptis kepenyse ir iš jų perteklių imami gaminti ketoniniai junginiai. Ketoninių junginių sintezė vyksta tik kepenų mitochondrijose. Nors ketoniniai junginiai susidaro kepenyse, tačiau jie ten nėra metabolizuojami, bet per kraują pernešami į kitus audinius (smegenis, širdį, raumenis).
Acetoacetatas paimamas į kraują arba kepenyse gali būti perdaromas į kitą ketoninį junginį – β-hidroksibutiratą. Aktyvios β-oksidacijos metu kepenyse susidaro aukšta NADH koncentracija. Tai paskatina didesnę acetoacetato dalį virsti β-hidroksibutiratu, todėl pagrindinis ketoninis junginys kraujyje yra būtent β-hidroksibutiratas. Badaujant daugeliui ląstelių riebalinės rūgštys ir ketoniniai junginiai tampa pagrindinėmis kuro molekulėmis. Gliukozė panaudojama pirmiausiai nerviniame audinyje ir eritrocituose.
Esant aukštai acetoacetato koncentracijai dalis jo perdaroma į acetoną. Acetonas nėra sunaudojamas ląstelėse, bet yra išskiriamas su iškvepiamu oru ir su šlapimu. Tokiu būdu organizmas pašalina perteklinį kiekį ketoninių junginių, kurie nėra spėjami panaudoti, bet, būdamos vandenyje tirpios rūgštys, sukelia acidozę.
Taigi, ilgai badaujant ketoniniai junginiai tampa pagrindinis energijos šaltinis daugeliui audinių. Tokiu būdu gliukozė išsaugoma smegenims ir eritrocitams. Jau po 2-3 dienų nuo badavimo pradžios ketoninių junginių koncentracija kraujyje yra pakankama, kad jos būtų panaudojamos smegenų ląstelėmis, taip jose sumažėja gliukozės poreikis. Ketoniniai junginiai – geros molekulės kurui; vienos β-hidroksibutirato molekulės oksidavimas iki CO2 ir H2O parūpina 27 ATP molekulių sintezę. Kadangi viena ATP molekulė šiose reakcijose yra panaudojama acetoacetato aktyvavimo procesuose, tai galutinis gautų ATP molekulių skaičius yra 26.
Ketoninių junginių koncentracija kraujyje normos būsenoje yra 1-3 mg/dl, bet badaujant žymiai padidėja. Ketoninių junginių koncentracijos padidėjimas kraujyje vadinama ketonemija, ketoninių junginių išskyrimas su šlapimu – ketonurija. Dažnai ketoninių junginių koncentracijos padidėjimą kraujyje ir šlapime vadinama ketoze. Ši būklė, kai visa organizmui reikalinga energija gaunama iš riebalų, dažnai vadinama normalia organizmo būsena. Bet tai nėra visiška tiesa, kadangi ketozė yra pastebima ir sergant cukriniu diabetu.
Padidėjusi kraujyje β-hidroksibutirato ir acetoacetato koncentracija mažina kraujo pH ir sukeliama acidozė. Kitaip sakant, ketoninių junginių kaupimas organizme sukelia ketoacidozę: šarminio rezervo sumažėjimas (kompensuojamoji acidozė), o sunkiais atvejais – pH nukrypimas (nekompensuojamoji acidozė), kadangi ketoniniai junginiai (išskyrus acetoną) yra vandenyje tirpios organinės rūgštys, galinčios sudaryti disociaciją.
Sergant cukriniu diabetu acidozė gali siekti pavojingų aukštumų, kadangi ketoninių junginių koncentracija, esant šiai ligai, gali padidėti iki 400-500 mg/dl. Sergant cukriniu diabetu, sunki acidozės forma – viena iš pagrindinių mirties priežasčių. Protonų kaupimas kraujyje sutrikdo deguonies surišimą su hemoglobinu, įtakoja funkcinių baltymų grupių jonizaciją, sutrikdo jų konformaciją ir funkciją.